salutació

A mi m'agraden els dinosaures i la paleontologia, ( i també l'arqueologia ) .... i a tu?
Es mostren els missatges amb l'etiqueta de comentaris Xina. Mostrar tots els missatges

dimecres, 31 de juliol del 2019

Les angiospermes i la seva relació amb els dinosaures no-aviaris.

L'èxit que han tingut les angiospermes des del Cretaci en comparació amb altres tipus de plantes s'explica està basat en un seguit de novetats evolutives en el camp de la reproducció i del metabolisme que les van fer més eficients que la resta del món vegetal. En el camp reproductiu, ens trobem a les mateixes flors (les quals no són més que fulles modificades) com a òrgans reproductors i als fruits com a sistemes de protecció i dispersió de les llavors. Les flors s'insereixen sobre una estructura anomenada receptacle floral, a la base del qual es troben els sèpals, un primer grup de fulles modificades. A sobre del receptacle floral es troba el carpel, la part femenina de la flor, la qual té forma d'ampolla i conté els primordis seminals, l'equivalent dels òvuls en les angiospermes. Al voltant del carpel hi ha els estams, la part masculina de la flor, la qual s'encarrega de la producció del pol·len de la planta. Al voltant d'aquestes estructures es troben els pètals, les fulles modificades de colors vius que són l'element més visible de la flor. Després de la fecundació, els primordis seminals es transformen en llavors i el carpel es transforma en el seu torn en un fruit que les protegeix (Marmi, 2013; Marmi et al., 2014).

Situació i forma del receptacle (r), els sèpals (s), els pètals (p), el carpel (g) i els estams (a) en tres tipus de flors.
Foto: Ulf Mehlig.
Les angiospermes del Cretaci Inferior tenen llavors i fruits no gaire grans i no mostren característiques pròpies d'una dispersió de les llavors assistida per animals relativament grans com poden ser els mamífers, les aus i, en el cas del Mesozoic, els dinosaures no-aviaris. Això es relaciona amb la preferència d'aquestes plantes per hàbitats oberts, en els quals les llavors haurien estat dispersades millor per la força del vent. La mida de les llavors i dels fruits que les emmagatzemen augmenta en les angiospermes del Cretaci Superior, quan aquestes plantes comencen a ser un element important dels boscos (veure també: Geografia, clima, flora i fauna no-dinosauriana durant el Juràssic i el Cretaci), la qual cosa mostra que els animals es van convertir en un element important de la propagació de les llavors. Per la seva banda, els insectes s'encarregaven del transport del pol·len (és a dir, la pol·linització), la qual cosa va comportar minimitzar l'autofertilització de les plantes a la vegada que s'augmentava la seva capacitat genètica i la seva capacitat d'adaptació. Pel que fa al metabolisme, les angiospermes van desenvolupar unes fulles amb uns nervis més densos que els de les gimnospermes i les falgueres, comportant una major eficiència en la fotosíntesi. De fet, a finals del Cretaci, les angiospermes havien arribat a nivells d'eficiència fotosintètica semblants a la dels actuals boscos tropicals. Això també les va permetre augmenta la taxa de transpiració, pel que van poder transferir una major quantitat de vapor d'aigua a l'atmosfera, tenint com a resultat l'increment de les pluges a nivell regional. Per tant, havien aconseguint la capacitat de transformar el clima (Marmi, 2013; Marmi et al., 2014).

Diferències entre el primordi seminal d'una gimnosperma i el d'una angiosperma. Es pot veure que el primordi seminal de l'angiosperma es diferencia del de la gimnosperma per la presència d'una protecció anomenada funícul.
Foto: Tameeria.
Per molt que la visió tradicional sobre l'aparició de les angiospermes basada en el registre fòssil situa aquest esdeveniment al Cretaci Inferior, les anàlisis moleculars de l'ADN de les angiospermes actuals suggereixen que les plantes amb flors podrien ja haver aparegut al Triàsic Superior o fins i tot al Mitjà. Algunes proves paleontològiques a favor d'aquesta hipòtesi serien grans de pol·len semblants als de les angiospermes del Triàsic Mitjà del Mar de Barentsz (Rússia) i la planta del Triàsic Superior dels EUA Sanmiguelia (veure també: La vida al Triàsic: la vegetació). Hi hagut bastants especialistes que no han acceptat com a vàlides aquestes possibles proves de l'existència d'angiospermes abans del Cretaci Inferior, havent-hi alguns paleobotànics que consideren a la Sanmiguelia com un tàxon germà de les angiospermes però no com una autèntica planta amb flors. Mentre encara no continuen clares la pertinença a les angiospermes d'aquestes possibles proves del Triàsic, durant l'última meitat de la dècada dels 2000 i la present dècada dels 2010 s'han descrits varis fòssils vegetals del Juràssic Mitjà i Superior de la Xina que s'han identificat com a angiospermes primitives (Schmeissneria, Xingxueanthus, Juraherba i Euanthus). El passat 2018 es va descriure el Nanjinganthus, una angiosperma basal de la Formació Xiangshan del Sud (Juràssic Inferior Toarcià-Juràssic Superior Aalenià, 182-170 M.A.), la qual cosa fa retrocedir encara més l'origen de les plantes amb flors en el registre fòssil. El Nanjinganthus presenta un receptacle en forma de copa i òvuls tancats, característiques que el classifiquen com una angiosperma. De fet, el registre fòssil d'angiospermes del Cretaci Inferior es bastant nombrós i divers com perquè es tracti de l'època en que van aparèixer, pel que la presència d'angiospermes al Juràssic Inferior o fins i tot al Triàsic confirma que la gran diversitat de les plantes amb flors observada del Cretaci Inferior és resultat d'un procés evolutiu que s'estava gestant des de desenes de milions d'anys endarrere, obligant tot això a replantejar la visó tradicional sobre l'evolució d'aquestes plantes. No obstant això, sembla que ser les angiospermes o possibles angiospermes del Juràssic i del Triàsic ocupaven un lloc secundari o terciari dins dels ecosistemes de l'època o dominaven hàbitats molt petits, una conclusió que s'ha inferit del Nanjinganthus, el qual es tractaria d'una planta aquàtica o terrestre favorable a viure a prop de l'aigua (Barrett, 2007; Fu et al., 2018).

Reconstrucció de la flor d'un Nanjingnathus.
Foto: Fu et al. (2018)/eLife.
Les angiospermes han construït un fenomen molt fort d'evolució compartida o coevulció amb els insectes. Aquest mateix procés coevultiu, encara que en menor mesura, també s'ha volgut establir entre les angiospermes i els dinosaures no-aviaris fitòfags (vegetarians). La primera referència a aquesta hipòtesi de coevolució dinosaures-angiospermes data de l'any 1978, quan en Robert Bakker, paleontòleg de la Universitat John Hopkins (Baltimore, Maryland) que va ajudar en la formulació i consolidació de bona part de les teories contemporànies sobre els dinosaures durant aquest període, va publicar a la revista científica Nature l'article Dinosaur feeding behaviour and the origin of flowering plants, en el qual proposava que els canvis en l'alimentació dels dinosaures no-aviaris fitòfags van ajudar en l'aparició i la diversificació de les angiospermes, desenvolupant-se així una relació d'interdependència entre els dos llinatges d'organismes. Bakker va basar la seva hipòtesi en les diferències observades tant entre la composició faunística de dinosaures com la composició vegetal del Juràssic i del Cretaci. Els boscos del Juràssic estaven dominats per les coníferes i els ginkgos al dosser forestal i per les ciques, les falgueres i les equisetals al sotabosc. Els gegantins i abundants sauròpodes dels ecosistemes juràssics, sobretot del Juràssic Superior, s'alimentarien de les fulles de les coníferes i dels ginkgos, mentre que els estegosaures, els ornitòpodes i, en molta menor mesura, els anquilosaures s'alimentarien de la vegetació del sotabosc. A causa de la gran presència dels sauròpodes en els ecosistemes juràssics, la pressió alimentària dels dinosaures estaria dirigit especialment cap als arbres, fent que el reemplaçament de noves plantes fos més favorable a altures més baixes, en els quals la pressió alimentària era menor. Durant el Cretaci, juntament amb la progressiva entrada de les angiospermes en les comunitats vegetals, hi va haver la desaparició dels estegosaures i un decreixement en la diversitat de sauròpodes que va anar acompanyada de la diversificació dels anquilosaures i dels ornitòpodes, la presència de teròpodes herbívors i l'aparició, en últim terme, dels ceratopsians i els paquicefalosaures. Encara que els sauròpodes supervivents continuaven alimentant-se de les coníferes, dels ginkgos i, ja al Cretaci Superior, de les primeres angiospermes d'altura, la immensa majoria de dinosaures no-aviaris herbívors no arriben a tenir la seva altura i, per tant, estaven especialitzats en el consum de les plantes de sotabosc, les quals tenien un nombre més gran d'angiospermes. La pressió alimentària es va traslladar als cinc primers metres sobre el nivell del terra, la qual cosa va portar a una major mortalitat de les plantes de sotabosc, sortint com a principals perjudicades les coníferes i les ciques, de creixement més lent, mentre que les angiospermes hi van aconseguir triomfar gràcies al seu creixement més ràpid provocat per les característiques mostrades abans. Així doncs, uns dinosaures van començar a prosperar a partir del Cretaci Inferior perquè es van especialitzar en les angiospermes i viceversa (Barrett, 2007).
Alguns dinosauròlegs, com en David Norman (Universitat de Cambridge) i en David Weishampel (Universitat John Hopkins), i paleobotànics, com en Scott Wing (Museu National d'Història Natural de Washington DC) i en Bruce Tiffney (Universitat de Califòrnia, Santa Bàrbara), han fonamentat les hipòtesis coevolutives d'en Bakker a través de les seves anàlisis. En Norman i Weishampel van confirmar una diversificació de certs llinatges de dinosaures herbívors contemporània a la de les angiospermes i van considerar que dos sistemes de mastegament desenvolupats per alguns dinosaures fitòfags del Cretaci estaven relacionats amb el processament d'angiospermes: un consistent en un tall potent i adaptat per a la manipulació de matèria vegetal dura que es troba en els ceratopsians i un altre, anomenat pleurocinesi, consistent en una sèrie d'articulacions als costats de les mandíbules que permeten la rotació entre els ossos mandibulars, estant la mandíbula inferior tancada, creat una força de trituració semblant a la produïda pels grans mamífers herbívors que permetria una trituració eficient de fulles fibroses i que es troba en els ornitòpodes iguanodonts. En Wing i en Tiffney van proposar que, com els dinosaures no-aviaris fitòfags necessitaven una quantitat de vegetació tan gran per satisfer els seus cossos monumentals, van mantenir boscos oberts durant el Cretaci i, per tant, van impedir el desenvolupament de boscos densos d'angiospermes (Barrett, 2007).

Descripció gràfica del mecanisme de pleurocinesi.
Foto: Nabavizadeh (2014)/The Hadrosaurs: Proceedings of the International Hadrosaur Symposium.
També hi ha paleontòlegs que no estan d'acord amb la hipòtesi de la coevolució dinosaures-angiospermes d'en Bakker, com en Paul Barrett (Museu d'Història Natural, Londres). En Barrett considera que no hi ha suficient evidència que constati una interrelació directa entre l'evolució de les angiospermes i la dels dinosaures. Per a provar-ho, mostra que, encara que hi hagi evidències de consum d'angiospermes per part de dinosaures durant el Cretaci (tal com els continguts estomacals de l'anquilosaure del Cretaci Inferior d'Austràlia Kunbarrasaurus i copròlits del Cretaci Superior de l'Índia relacionats amb sauròpodes titanosaures que mostren nombrosos fitòlits, o grans de sílice produïts per les fulles d'algunes plantes per tal de protegir-se dels animals, que s'assemblen als que fan angiospermes com les palmeres), la informació disponible en aquest sentit és massa limitada com perquè es pugui constatar sense dubtes que els dinosaures no-aviaris s'alimentessin d'angiospermes de forma general, ja que sempre es pot considerar que no eren la dieta habitual ni del Kunbarrasaurus ni dels titanosaures i que, en el cas del Kunbarrasaurus, podria tractar-se també de la mort de l'animal. La resta d'evidències que es tenen sobre la taula no mostren que cap dinosaure no-aviari o grup de dinosaures no-aviaris ajudés en la propagació d'un tipus d'angiosperma en particular, donant-se més aviat la situació contrària, pel que els dinosaures herbívors eren d'alimentació generalista i, per tant, menjaven tot tipus de plantes tant angiospermes com no-angiospermes. A més, la possible existència de les angiospermes des de la mateixa època que els dinosaures o fins i tot abans ha estat utilitzada per en Barrett com una evidència que els dinosaures no haurien estat un element important en l'evolució de les angiospermes, una conclusió a la qual també es pot arribar suposant que les angiospermes del Triàsic i del Juràssic serien massa escasses per a poder alimentar amb condicions a tot un seguit d'espècies de dinosaures de mides molt diferents. La poca importància de les angiospermes va continuar durant el Cretaci Inferior, només podent parlar d'algun nivell de coevolució durant el Cretaci Superior, tal com demostra el fet que els ceratopsians, els hadrosàurids i els titanosaures tinguessin el seu clímax de diversitat al mateix moment que les angiospermes es convertien en un element important dels boscos durant el Cretaci Superior i la supervivència només d'aquells sauròpodes que tenien dents subcilíndriques al mateix període (mentre que la resta de sauròpodes presenten dents espatulades, la qual cosa indica que aquests dinosaures només estaven adaptats a menjar gimnospermes), però això encara no s'ha pogut confirmar del tot. (Barrett, 2007;  Barrett et al., 2007; Royo-Torres, 2007).

Imatges microscòpiques dels continguts estomacals del Kunbarrasaurus.
Foto: Molnar & Clifford (2000)/Journal of Vertebrate Paleontology.
En Barrett rebat a en Norman i en Weishampel en el tema dels mecanismes mandibulars, ja que els primers dinosaures dels quals se sap que tenien pleurocinesi (els driosàurids i els camptosàurids) són del Juràssic Superior, sent més antics que l'època en la qual les angiospermes comencen a destacar. També critica a Bakker en el sentit que va generalitzar massa a l'hora de parlar de l'estructura ecològica dels dinosaures fitòfags per poder construir la seva hipòtesi. Així doncs, hi ha sauròpodes que menjarien a alçades baixes o en un rang molt més gran que només menjar arbres de gran altura a causa que presentaven una massa corporal relativament reduïdes i colls i extremitats anteriors massa curts (com els dicreosàurids) o a causa que mostraven colls amb un ampli grau de moviments verticals i horitzontals (com els diplodòcids), els sauròpodes juvenils s'alimentarien de plantes més baixes que els adults fent que la pressió alimentària al sotabosc fos igualment important per la presència també dels estegosaures i els ornitòpodes, els sauròpodes continuaven exercint una pressió alimentària bastant important als continents meridionals durant el Cretaci, els dinosaures fitòfags ja exercien un gran nombre d'alteracions en la vegetació des d'abans que les angiospermes es diversifiquessin i que també ja haurien manipulat des de feia temps les capacitats biològiques de les plantes a través de trepitjar les plantes que es troben al seu voltant però sense alimentar-se d'elles. En aquest sentit, encara es podria perdonar el desenvolupament del mecanisme mandibular dels ceratopsians al desenvolupar-se al grup durant la conquesta definitiva de les angiospermes al Cretaci Superior. El paleontòleg argentí Rodolfo Coria va assenyalar durant la dècada dels 2000 l'existència d'un canvi faunístic en els dinosaures del Cretaci Superior Turonià (94-89 M.A.) de la Patagònia argentina en el qual desapareixen els sauròpodes diplodocoïdeus i els teròpodes carcarodontosàurids i es diversifiquen els titanosaures i els teròpodes abelisàurids i que estaria relacionada amb una diversificació considerable de les angiospermes a Amèrica del Sud (Barrett, 2007, Barrett et al., 2007).

Dents de sauròpode procedents d'un jaciment de la Formació Kem Kem (Albià-Cenomanià) proper a la ciutat marroquina d'Erfoud. Algunes es correspondrien amb titanosaures i d'altres amb rebaquisàurids, sauròpodes caracteritzats per dents subcilíndriques relacionades amb el consum d'angiospermes.
Foto: Holwerda et al. (2018)/PeerJ.
El 2009, en Barrett, juntament amb uns altres paleontòlegs més, va provar la hipòtesi no favorable a una coevolució dinosaures-angiospermes utilitzant una base de dades de les referències que hi havia fins llavors a la literatura científica sobre els dinosaures herbívors i la flora del Cretaci, les quals es van comparar mitjançant un sistema estadístic. Pel que fa als sauròpodes, van observar que el nombre de gèneres va augmentar lleugerament entre el Berriasià i l'Albià, va disminuir de forma relativa entre el Cenomanià i el Coniacià i el nombre de gèneres va tornar a pujar durant el Campanià i el Maastrichtià, encara que la diversitat de formes de sauròpodes no ho va fer perquè el registre fòssil de sauròpodes de finals del Cretaci està compost exclusivament per titanosaures. Els anquilosaures tenen una diversitat limitada a principis del Cretaci, encara que no seria resultat d'un esdeveniment ecològic real si no d'un biaix de preservació dels fòssils ja que la diversitat és la mateixa durant el Juràssic Superior. Els anquilosaures van començar a ser importants durant el Barremià-Aptià, el mateix moment en què comença a declinar la diversitat d'estegosaures fins a l'extinció. Els ornitòpodes, un component secundari de la fauna del Juràssic Superior, comencen a ser importants durant el Cretaci Inferior, però es constata cap augment de la seva diversitat a principis del Cretaci Superior que es pogués relacionar amb el creixement de la presència de les angiospermes als ambients terrestres. Els ceratopsians i els paquicefalosaures només són dinosaures abundants durant el Campanià i el Maastrichtià i només en certs continents. Els teròpodes herbívors apareixen al Barremià, però només consistitueixen un màxim del 13% de la diversitat de dinosaures fins a l'extinció del Límit K/T (Butler, 2009).

Percentatge (dalt) i nombre (baix) de presència de fòssils (dreta) i de gèneres (esquerra) de dinosaures fitòfags durant el Cretaci.
Foto: Butler (2009)/Journal of Evolutionary Biology.
Les angiospermes són un element molt poc comú durant el Berriasià-Valanginià, comencen a diversificar-se de forma significativa entre el Barremià i l'Aptià i entre l'Aptià i el Cenomanià es constitueixen els primers paisatges vegetals importants d'angiospermes. Durant el Turonià-Santonià hi ha una aparent reducció de la diversitat d'angiospermes i un petit augment del de coníferes, encara que aquest efecte seria més aviat tafonòmic, relacionat amb la preservació dels sediments del període. Els resultats d'aquest estudi mostren que, malgrat que els sauròpodes van sofrir un esdeveniment d'extinció durant el Límit Juràssic/Cretaci, van continuar sent un element el suficientment important durant el Cretaci com perquè es poguessin dedicar a l'alimentació dels arbres de gran altura. També es va confirmar que la reducció en la diversitat dels sauròpodes i dels estegosaures i l'augment de la dels ornitòpodes i els anquilosaures es va donar lloc abans de la primera gran diversificació de les angiospermes, sent l'extinció dels estegosaures i l'increment contemporani de la presència dels anquilosaures l'únic fenomen que s'hi podria relacionar, encara que també es podria associar a un descens coetani del nombre d'espècies de les ciques i les bennettitals, plantes que serien l'aliment predilecte dels estegosaures. De fet, la radiació dels anquilosaures a mitjans del Cretaci seria més conseqüència de l'extinció dels estegosaures més que no pas de la radiació de les angiospermes, tenint en compte que els primers boscos angiospermes van sorgir després del boom dels dinosaures cuirassats. Com a últim apunt, es confirma que l'únic període en el qual hi podria haver una coevolució entre dinosaures i angiospermes seria el Santonià-Maastrichtià, abans de l'extinció massiva de fa 66 M.A. (Butler, 2009).

Percentatge (a, b i d) i nombre (c) de presència de fòssils (a), gèneres (b) i grans clades (c i d) de plantes durant el Cretaci.
Foto: Butler (2009)/Journal of Evolutionary Biology.
Si al final podem parlar d'una coevolució entre els dinosaures no-aviaris i les angiospermes durant els últims 15-20 milions d'anys del Cretaci Superior, encara pot ser que les mateixes plantes amb flors influïssin en la mateixa extinció d'aquests animals. El 2018 es va publicar un estudi per part d'en Michael Frederick (neurocientífic de la Universitat de Baltimore) i d'en Gordon Gallup (psicòleg de la Universitat d'Albany, Estat de Nova York) en el qual arribaven a la conclusió que l'aparició de les angiospermes tòxiques, ocorreguda durant el Cretaci Superior, podria haver tingut un paper en l'extinció dels dinosaures no-aviaris herbívors (i, en conseqüència, també els dinosaures no-aviaris carnívors dels quals serien les seves preses), agafant la hipòtesi d'una extinció gradual dels dinosaures no-aviaris en els últims milions d'anys abans del Límit K/T. La gran quantitat de matèria vegetal que necessitarien els dinosaures no-aviaris herbívors del Cretaci Superior podria haver portat a l'adquisició de toxines per part de les angiospermes en un efecte de pressió alimentària. Tot i això, aquests animals continuaven necessitant una gran quantitat de matèria vegetal, pel que és possible que consumissin les plantes tòxiques, no distingint-les de les no-tòxiques, per molt que es poguessin morir, podent portar això a l'extinció d'algunes espècies. Al mateix moment, hi hauria uns altres dinosaures herbívors o omnívors de mida més reduïda, com alguns teròpodes no-aviaris derivats i els avantpassats de les aus actuals, que podrien haver desenvolupat una defensa contra les angiospermes tòxiques a causa que necessitarien menys matèria vegetal per a subsistir, fent que finalment els neornites sobrevisquessin al Límit K/T. En Frederick i en Gallup van esmentar experiments sobre l'efecte dels productes tòxics en cocodrils i aus per poder inferir com haurien afectat en els dinosaures no-aviaris. En l'experiment dels cocodrils, uns 10 exemplars situats en un aquari es van dividir en dos grups, un al qual se li va oferir carn de pollastre i apomorfina després de la carn per intoxicar-los i un altre al qual només se'ls hi va oferir l'apomorfina. Tant un grup de cocodrils com l'altre no es va veure afectat per l'apomorfina, pel que es va comprovar que aquests rèptils no desenvolupen rebuig a les substàncies tòxiques. Pel que fa als ocells, a un grup de gralles blaves americanes se'ls hi va oferir menjar papallones monarques, uns insectes que tenen toxines al seu cos. Després d'haver-les ingerit, les gralles blaves americanes sentien repulsió de les papallones monarques amb la seva simple visualització. Així doncs, i suposant que el rebuig dels aliments tòxics fos propi dels neornites, en Frederick i en Gallup van suposar que la falta d'aquest rebuig en els dinosaures no-aviaris els hauria ajudat en el camí de l'extinció definitiva (Frederick & Gallup, 2018).
Fonts:
Barrett, P. M. (2007). "La evolución de los dinosaurios y las plantas con flores: ¿coevolución o coincidencia?" Dins de: Sanz, J. L. (ed.), Los dinosaurios en el siglo XXI, p. 141-161. Tusquets Editores. ISBN: 978-02-5333-497-8.
Barrett, P. M., Chiappe, L. M., Coria, R., Pereda, X., de Ricqlès, A., Royo-Torres, R., Sanz, J. L., Weishampel, D. & Zhou, Z. (2007). "Segundo debate general: Coevolución dinosaurios-plantas." Dins de: Sanz, J. L. (ed.), Los dinosaurios en el siglo XXI, p. 233-238. Tusquets Editores. ISBN: 978-02-5333-497-8.
Butler, R. J., Barrett, P. M., Kenrick, P. & Penn, M. G. (2009). "Diversity patterns amongst herbivorous dinosaurs and plants during the Cretaceous: implications for hypotheses of dinosaur/angiosperm co-evoution." Journal of Evolutionary Biology, Vol. 22 (3): p. 446-459. https://doi.org/10.1111/j.1420-9101.2008.01680.x
Frederick, M. J. & Gallup, G. G. Jr. (2018). "The demise of dinosaurs and learned taste aversions: The biotic revenge hypothesis." Ideas in Ecology and Evolution, Vol. 10: p. 47-54. https://doi.org/10.4033/iee.2017.10.9.c
Fu, Q., Diez, J. D., Pole, M., Ávila, M. G., Liu, Z.-J., Chu, H., Hou, Y., Yin, P., Zhang, G.-Q., Du, K. & Wang, X. (2018). "An unexpected noncarpellate epigynous flower from the Jurassic of China." eLife, Vol. 7: article e38827. https://doi.org/10.7554/eLife.38827.001 
Marmi, J. (2013). Un passeig per la història de la biosfera. Institut Català de Paleontologia. ISBN: 978-84-695-8520-7
Marmi, J., Fortuny, J., Blanco, A., Bolet, A., Vila, B. & Sellés, A. (2014). El fín del edén mesozoico. Pangea, Vol. 1: p. 28-40. ISSN: 2341-491X
Royo-Torres, R. (2007). "El modelo fitófago en dinosaurios saurisquios: la solución saurópoda." Dins de: Sanz, J. L. (ed.), Los dinosaurios en el siglo XXI, p. 209-231. Tusquets Editores. ISBN: 978-02-5333-497-8.

dimarts, 25 de juny del 2019

Ambopteryx longibrachium, el Yi qi 2.0.

Ara ja fa una mica més de quatre anys, es va presentar el Yi qi, un peculiar teròpode escansoriopterígid del Juràssic Superior de la Xina que es diferencia de tots els altres dinosaures existents per la possessió d'ales membranoses semblants a les dels pterosaures o a les dels ratpenats. Aquest 8 de maig, es va donar a conèixer, de la mà de paleontòlegs de l'Institut de Paleontologia de Vertebrats i Paleoantropologia (Beijing) liderats per en Min Wang i sent publicats els seus resultats a la revista científica per excel·lència Nature, un altre escansoriopterígid xinès que mostra les mateixes característiques en les extremitats anteriors que el Yi i que, de retruc, confirma que les ales membranoses o patagis serien una altra forma a través de la qual els dinosaures haurien aconseguit la capacitat de volar juntament amb les plomes pennàcees, encara que aquesta última alternativa la que ha prevalgut fins ara.

Foto (a) i dibuix amb diferenciació entre els diferents ossos (b) de l'holotip de l'Ambopteryx.
Foto: Wang et al. (2019)/Nature.
El nou dinosaure amb patagi ha rebut un nom més llarg que el Yi i d'origen grec i llatí (a diferència del nom totalment xinès del Yi): Ambopteryx longibrachium El nom genèric Ambopteryx significa "dues ales" en referència a la semblança de les ales d'aquest dinosaure amb les dels pterosaures, mentre que el nom específic longibrachium significa "braç llarg" i prové de les seves extremitats anteriors. especialment allargades. L'holotip de l'Ambopteryx és un esquelet gairebé complet i en connexió anatòmica conservat en dues làmines de roca com a motlle i contramotlle i que ha preservat restes de teixits tous (tant de plomes com de la membrana que cobriria les seves ales). Aquest esquelet prové d'estrats de la Formació Haifanggou (Juràssic superior Oxfordià, 163 M.A.) situats a prop del poble de Wubaiding (província xinesa de Liaoning). L'Ambopteryx és una mica anterior al Yi, de la Formació Tiaojishan (mitjans i finals de l'Oxfordià, 160-157 M.A.). L'holotip de l'Ambopteryx seria un subadult o un adult a causa de la fusió de les últimes vèrtebres caudals en un pigostil i l'absència de pous a la superfície dels ossos que indiquessin una absència d'ossificació periòstica (capes d'os que hi ha entre la matriu òssia i la capa de teixits sanguinis i nerviós que la cobreix o periosti). La longitud de l'animal és de 32 cm i el seu pes seria de 306 g, el que el converteix en un dels escansoriopterígids més gran a la vegada que és un dels dinosaures no-avaris més petits que es coneixen.

Detalls del coll (a), les vèrtebres caudals i el pigòstil (b), el braç esquerre (c) i la pelvis i la cama dreta (d) de l'holotip de l'Ambopteryx. A la foto a s'hi poden observar unes línies marrons que surten de les vèrtebres cervicals, corresponents a les plomes. A la foto c es marca amb una fletxa blava la situació del teixit corresponent al patagi.
Foto: Wang et al. (2019)/Nature.
L'Ambopoteryx ha estat identificat com un escansoriopterígid a través de la presència en aquest dinosaure d'una escàpula estesa cap avall, una cresta deltopectoral de l'húmer reduïda, un metacarpià III més llarg que el seu equivalent II i un dit III de la mà molt més llarg de la resta. Dins dels escansoriopterígids, es relaciona amb el Yi per la presència d'un element estiliforme (un os en forma de vara que s'estén des de l'extrem distal del cúbit, el qual serviria per sostenir el patagi a causa que incrementaria la seva superfície aerodinàmica) i una tíbia especialment curta. A la vegada, l'Ambopteryx es diferencia del Yi en base a un cúbit molt més ample que el radi, la fusió de les últimes vèrtebres caudals en un pigostil i l'absència d'un punt de transició entre el pigostil i les més flexibles vèrtebres caudals anteriors (a diferència del que passa amb altres teròpodes no-avaris, tinguin pigostil o no, i algunes aus basals), uns braços un terç més llargs que les cames, un procés postacetbular de l'ili recte i en forma de vara i una tíbia més curta que l'húmer. Al davant de la cintura pèlvica, a la posició del que seria l'estómac en l'animal viu, s'han identificat 20 pedres que servirien per a processar millor els aliments (és a dir, gastròlits) i possibles fragments d'ossos, els quals serien una prova de la dieta de l'Ambopteryx i potser d'altres escansoriopterígids. La combinació d'ossos i de gastròlits (associats a una dieta herbívora) fa pensar que seria omnívor. Les plomes de l'holotip de l'Ambopteryx es localitzen al voltant del cap, el coll i les espatlles i són de caràcter filamentós (a l'igual que les del Yi); mentre que a les extremitats anteriors i a l'abdomen hi ha una capa de color marró amb estries ondulants, la qual també s'observa a l'holotip del Yi i que seria el teixit membranós que formaria el seu patagi.

Detall de l'abdomen de l'holotip de l'Ambopteryx. L'abreviació ub fa referència a la massa òssia corresponent al contingut digestiu del dinosaure, mentre que l'abreviació ga fa referència als gastròlits.
Foto: Wang et al. (2019)/Nature.
L'anàlisi filogenètic de l'Ambopteryx el confirma com el tàxon germà del Yi. La presència d'un patagi en dues formes d'escansoriopterígids ha servit a l'equip d'en Wang per a revisar la possible conducta d'altres membres del grup. La cua escurçada i les extremitats anteriors allargades de l'Ambopteryx i d'altres escansoriopterígids (encara que en aquests la cua no acabi en un pigostil) donen suport a la hipòtesi d'un comportament volador en tot el clade gràcies a que haurien ajudat a incrementar l'estabilitat corporal a través del canvi del centre de pes de l'animal en una posició més davantera que en altres dinosaures. A més, això confirma que els gegantins dits III de la mà que s'observen en tots els escansoriopterígids servirien com a sosteniment d'un patagi, sospita que alguns paleontòlegs ja tenien des de fa anys a través de la presència d'un teixit semblant al del patagi de l'Ambopteryx i del Yi al voltant dels braços de l'Epidendrosaurus i de l'Epidexipteryx, més que no pas com a part d'una funció alimentària consistent en extreure insectes de les soques dels arbres, sent aquesta la hipòtesi majoritària fins ara. No obstant això, és possible que el patagi dels escansoriopterígids no servís per a una funció voladora, o no només per a això, ja que podria servir com una estructura ornamental que serviria per atreure el sexe oposat o per allunyar als depredadors o com un suport de propulsió a l'inici del vol (mentre que durant la resta de l'activitat es planaria).

Arbre filogenètic simplificat i calibrat temporalment dels Pennaraptora amb la inclusió de l'Ambopteryx. Les dues tipologies d'escansoriopterígids (amb presència directa de patagi o indirecta del mateix) estan representades amb reconstruccions de l'esquelet, mentre que la resta de dinosaures estan representats amb siluetes.
Foto: Wang et al. (2019)/Nature.
D'una forma o una altra, els escansoriopterígids van desenvolupar la capacitat de volar d'una forma molt diferent a com ho van fer les aus o altres teròpodes del clade Pennaraptora com els troodòntids i els dromeosàurids, no només per les ales membranoses a diferència de les ales emplomallades, si no també per tenir els primers un húmer i un cúbit molt llargs i uns metacarpians molt curts i més aviat la situació contrària en els darrers. En aquest sentit, el llarg dit manual III i l'element estiliforme haurien ajudat a sostenir el patagi com a compensació per aquesta estructura dels braços. Per tant, es torna a confirmar que diferents grups de petits teròpodes derivats, d'hàbits segurament arborícoles, van adquirir la capacitat de volar a través de diferents mecanismes, dels quals ha sobreviscut fins al moment actual l'aposta pels metacarpians llargs i les plomes a causa que va patir diverses modificacions al llarg dels milions d'anys que van incrementar l'eficàcia del vol, mentre que, per ara, només es coneix l'aposta pels metacarpians curts i el patagi en dues espècies del Juràssic Superior, amb el que no es pot confirmar si va sobreviure més milions d'anys encara que segurament no hauria sobreviscut a l'Extinció Massiva del Límit Cretaci-Paleògen.

Reconstrucció d'un Ambopteryx.
Foto: Chung-Tat Cheung.
Font: 
Wang, M.; O'Connor, J. K.; Xu, X.; Zhou, Z (2019). "A new Jurassic scansoriopterygid and the loss of membranous wings in theropod dinosaurs." Nature, Vol. 569: p. 256-259. https://doi.org/10.1038/s41586-019-1137-z

dijous, 23 de maig del 2019

Xingtianosaurus ganqi i la mà dels lladres d'ous.

El 25 d'abril es va publicar a la revista científica en accés obert Scientific Reports la descripció, per part d'un equip de paleontòlegs xinesos liderats per en Riu Qiu (Institut de Paleontologia de Vertebrats i Paleoantropologia, Beijing), d'un nou esquelet parcial de Teròpode emplomallat procedent del centre neuràlgic dels dinosaures emplomallats: la Formació Yixian (Cretaci inferior Barremià-Aptià, 129-122 M.A.; província de Liaoning). L'exemplar en qüestió ha resultat ser l'holotip d'un nou tàxon d'Oviraptorosaure: Xingtianosaurus ganqi, que a més aporta tot un seguit d'informació sobre l'evolució de la mà dels anomenats "lladres d'ous" des de les formes basals de la mateixa Formació Yixian fins a les més derivades del Cretaci superior.

Foto (a) i dibuix amb les abreviacions dels ossos (b) de l'holotip del Xingtianosaurus.
Foto: Qiu et al. (2019)/Scientific Reports.
L'holotip del Xingtianosaurus ganqi es tracta d'un esquelet parcial al qual li falten el crani, les vèrtebres cervicals, les vèrtebres dorsals anteriors i el coracoides. La falta de crani de l'holotip del nou Oviraptorosaure xinès es troba en l'origen del nom del dinosaure, perquè la part genèrica Xingtianosaurus prové de Xingtian, un déu autòcton xinès que va ser decapitat i que, malgrat això, va ser lluitant contra la Divinitat Primordial, el seu principal enemic; mentre que el nom específic fa referència al ganqi, l'arma utilitzada per Xingtian en les seves batalles. Com la immensa majoria dels fòssils de la Formació Yixian, es troba comprimit en una llosa de roca i preserva impressions de les plomes, encara que en un estat de conservació no tant bo com en els fòssils del principal Oviraptorosaure de Liaoning, el Caudipteryx. El Xingtianosaurus és el tercer membre conegut de la família dels Caudiptèrids (Caudipteridae), per ara autòctona del Cretaci inferior de Liaoning i que també inclou al ja mencionat Caudipteryx i al Similicaudipteryx.

Foto (a) i dibuix (b) de la mà esquerra de l'holotip del Xingtianosaurus. L'abreviació ra fa referència al metacarpià radial, mentre que els forats negres de les falanges són els orificis per al lligaments dels tendons, tal com veurem més avall. A la foto es veuen les fileres de plomes.
Foto: Qiu et al. (2019)/Scientific Reports.
El Xingtianosaurus es troba caracteritzat pels següents caràcters ossis: petits pleurocels o cavitats pneumàtiques a la superfície lateral del centre de les vèrtebres dorsals, un húmer més llarg que l'escàpula, un cúbit proporcionalment llarg que presenta una longitud comparable a la de l'húmer, un angle de metacarpià radial (que, tal com indica el seu nom, articula amb el radi i que en els mamífers rep el nom d'escafoide) d'uns 39º (relativament petit dins del seu grup de dinosaures, a causa que la majoria d'Oviraptorosaures tenen un angle del radial superior a 48º), un metacarpià I molt curt que suposa menys del 40% de la mida del metacarpià II i uns orificis per al lligament dels tendons d'una mida relativament petita. Les impressions de les plomes es troben al costat de l'avantbraç i dels metacarpians i són de tipus pennaci. Aquestes plomes haurien cobert la meitat distal de l'avantbraç formant una petita ala que segurament no tindria cap funció aerodinàmica. Això suposa una diferència amb la morfologia de l'ala identificada en els fòssils de Caudipteryx, la qual només s'estén al llarg dels metacarpians.

Detall de les vèrtebres dorsals (a), l'estèrnum i l'escàpula esquerres (b) i l'escàpula dreta (c) de l'holotip del Xingtianosaurus. L'abreviació pl fa referència als pleurocels de les vèrtebres dorsals.
Foto: Qiu et al. (2019)/Scientific Reports.
A causa de l'absència de crani, en Qiu i els seus col·laboradors van efectuar una primera anàlisi filogenètica del Xingtianosaurus que tenia com a camp d'actuació tots els Teròpodes Celurosaures. En aquesta primera anàlisi, es va obtenir el Xingtianosaurus com un Oviraptorosaure basal proper filogenèticament al Caudipteryx, uns resultats recolzats per característiques pròpies dels Caudiptèrids respecte d'altres Oviraptorosaures més derivats com una cua molt curta amb menys de 26 vèrtebres, un húmer relativament curt que suposa la meitat de la mida del fèmur, un metacarpià I menor al 50% de la longitud del metacarpià II, una superfície articular proximal de la primera falange del dit manual I lleugerament cóncava i una porció proximal del metatarsià III comprès lateralment. La pertinença del Xingtianosaurus dins dels Caudiptèrids va ser confirmada en una anàlisi filogenètica només sobre els Oviraptorosaures, en la qual la unió amb el Caudipteryx i el Similicaudipteryx quedava resolta només per un caràcter, el qual, a més, era diferent dels mostrats anteriorment: un procés preacetabular de l'ili que s'estén ventralment per sota del marge dorsal de l'acetàbul.

Resultat de les anàlisis filogenètiques del Xingtianosaurus. Els ossos dibuixats a la dreta dels noms d'alguns dels dinosaures representen els seus respectius carpians radials, els quals es troben acompanyats (menys en el Jiangxisaurus ganzhouensis) pel seu angle, cosa que veurem més avall.
Foto: Qiu et al. (2019)/Scientific Reports.
Al ser les mans la part més conservada de l'holotip del Xingtianosaurus, en Qiu i els seus col·laboradors han dedicat tot un apartat a la relació entre les mans del nou Oviraptorosaure xinès i les dels seus cosins. Aquestes mostren a la vegades caràcters d'altres "lladres d'ous" primitius com el Caudipteryx, tal com ja s'ha mostrat abans, però també trets més propis dels Oviraptorosaures derivats del Cretaci superior com els orificis per al lligament de tendons de petita mida i tres falanges unguals (sent més grans les pertanyents als dits I i II que la del dit III). El Xingtianosaurus també es diferencia del Caudipteryx en el fet que la longitud combinada de la primera i la segona falanges del dit II són 1,1 vegades més gran que el metacarpià II, una condició semblant a la dels Oviraptòrids, mentre que en el Caudipteryx aquesta relació és d'1,5 vegades més gran la primera mesura que l'última, una proporció més semblant a la dels Quenagnàtids. Això indicaria que la condició del Xingtianosaurus seria la primitiva en els Oviraptorosaures, evolucionant de forma independent la condició vista en el Caudipteryx i en els Quenagnàtids. A més, el descobriment de la mà del Xingtianosaurus confirma que el Caudipteryx seria un dinosaure no-aviari i no una au primitiva no voladora com afirmen alguns paleontòlegs.

Arbre filogenètic simplificats dels Oviraptorosaures on es mostra l'anatomia manual d'algunes espècies de diferents nivells evolutius (de a a g: Protoarchaeopteryx, Xingtianosaurus, Caudipteryx, Elmisaurus, Hagryphus, Citipati i Heyuannia). Les diferents formes geomètriques mostren les característiques de la mà d'aquests dinosaures en cada moment de la seva història evolutiva (l'abreviació MC fa referència al metacarpià).
Foto: Qiu et al. (2019)/Scientific Reports.
En Qiu i els seus col·laboradors també han parlat de l'angle del metacarpià radial a l'hora de fer hipòtesis sobre l'evolució de les mans dels Oviraptorosaures. Aquest angle es correlaciona amb l'extensió de les mans, pel que, com més gran sigui l'angle del radial, està permès més moviment de les mans. Aquest angle es troba molt desenvolupat en els Celurosaures Maniraptors respecte a altres Teròpodes més basals, la qual cosa també es relaciona amb una major capacitat per protegir les plomes de les extremitats anteriors. Com ja s'ha indicat abans, els angles dels radials de molts Oviraptorosaures són molt superiors als 48º (unes xifres bastant més grans que les que es troben en altres clades de Maniraptors com els Terizinosaures, els Troodòntids i els Dromeosàurids). Els 39º del Xingtianosaurus són més propers als d'aquests altres dinosaures i, per tant, més propers al que serien la condició basal en els Oviraptorosaures, la qual cosa també és una prova que el gran angle del radial en altres espècies de "lladres d'ous" va evolucionar de forma independents entre unes i les altres.

Reconstrucció d'un Xingtianosaurus en comparació amb un gat.
Foto: Cisiopurple.

dissabte, 30 de març del 2019

Lingyuanosaurus sihedangensis, nou Terizinosaure del Cretaci inferior de la Xina.

El 22 de març es va publicar a la revista Scientific Reports la descripció d'un nou Teròpode Terizinosaure de la prolífica Biota de Jehol a la província xinesa de Liaoning per part dels paleontòlegs de l'Institut de Paleontologia de Vertebrats i Paleoantropologia (Beijing) Xi Yao, Chun-Chi Liao i Xing Xu i de la Universitat d'Alberta (Edmonton, Canadà) Corwin Sullivan. Aquest Terizinosaure és interessant perquè mostra una combinació de característiques d'altres Terizinosaures basals del Cretaci inferior (Beipiaosaurus, Falcarius...) i de Terizinosaures derivats del Cretaci superior (Therizinosaurus, Segnosaurus...) que ha ajudat a comprendre sobre la forma en que aquests peculiars dinosaures van consolidar els seus trets corporals relacionats amb una dieta herbívora i que els diferencien tant d'altres Teròpodes.

Vèrtebres cervicals (a, b, c) i dorsals (d, e, f, g, h, i) de l'holotip del Lingyuanosaurus. L'abreviació ppdl fa referència a la làmina paradiapofísica.
Foto: Yao et al. (2019)/Scientific Reports.
El Lingyuanosaurus sihedangensis, tal com s'anomena el nou dinosaure xinès, està basat en un esquelet parcial consistent en un centre vertebral cervical; vèrtebres dorsals, sacres i caudals parcials; una vèrtebra caudal completa, algunes costelles dorsals, fragments d'húmer, dues urpes de la mà, un ili gairebé complet, un fragment d'isqui, un fèmur complet, una tíbia incompleta i un astràgal dret. Els fòssils provenen de la localitat de Sihedang dins de la ciutat de Lingyuan, a l'oest de Liaoning (dues unitats administratives a les que fa referència el nom complet del Terizinosaure). Els sediments on es va trobar els fòssils del Lingyuanosaurus no se sap si, dins de l'esquema geològic de la Biota de Jehol, són de la Formació Yixian (Cretaci inferior Aptià, 125-121 M.A.; d'on provenen els altres dos Terizinosaures de Liaoning: Beipiaosaurus i Jianchangosaurus) o de la Formació Jiufotang (Cretaci inferior Aptià, 120 M.A.).

Ili (a, b) i isqui (c i d) de l'holotip del Lingyuanosaurus. L'abreviació pp fa referència al peduncle púbic.
Foto: Yao et al. (2019)/Scientific Reports.
Algunes de les característiques de diagnòstic del Lingyuanosaurus són unes vèrtebres dorsals posteriors amb una làmina paradiapofísica (una làmina que connecta la diapòfisi, l'apòfisi transversa de les vèrtebres que prové de l'arc neural, amb la parapòfisi, l'apòfisi transversa que prové del centre vertebral) que separen les fosses infradiapofísiques (fosses situades a sota de la diapòfisi) anterior i posterior, un ili amb bona part del seu marge dorsal convex però amb la seva part posterior cóncava i una fossa subtriangular situada per sobre del peduncle públic (procés ossi de l'ili per a l'articulació amb el pubis). El Lingyuanosaurus s'ha pogut identificar com un Terizinosaure a partir de vèrtebres dorsals amb una estructura laminar complexa, urpes de les mans aplanades cap al costat i amb ranures col·laterals (ranures que recorren l'urpa des de la seva part dorsal fins a la punta) posicionades dorsalment i un ili amb un procés preacetabular profund, un procés postacetabular reduït i un peduncle púbic allargat. Algunes de les característiques derivades del Lingyuanosaurus són una superfície articular del peduncle púbic de l'isqui dirigida cap al costat dret i un cap femoral inclinat, mentre que algunes de les seves característiques basals són una tíbia més llarga que el fèmur i l'absència de pleurocels (cavitats pneumàtiques vertebrals) a la superfície lateral de les vèrtebres caudals anteriors. Aquest caràcter transicional entre les dues formes extremes de Terizinosaures queda confirmat per l'anàlisi filogenètica del Lingyuanosaurus, en la qual queda a mig camí entre el Falcarius, el Beipiaosaurus i el Jianchangosaurus per una banda i l'Alxasaurus (Cretaci inferior de Mongòlia Interior) i els Terizinosaures més derivats que aquest per una altra.

Urpes de la mà de l'holotip del Lingyuanosaurus. L'abreviació cg fa referència a les ranures col·laterals.
Foto: Yao et al. (2019)/Scientific Reports.
Parlant en concret de l'ili, una de les parts del cos que més van contribuir a l'adaptació al vegetarianisme dels Terizinosaures juntament amb les extremitats posteriors, el Lingyuanosaurus presenta algunes de les característiques que van ajudar en la consolidació d'aquesta adaptació en els Terizinosaures derivats (les quals, juntament amb les que ja s'han explicat referents a aquest os com a sinapomorfies de tot el grup i com a pròpies de les espècies derivades, inclouen l'augment de la inclinació del marge dorsal ilíac), mentre que manté com a característica primitiva un estrenyiment pels costats del peduncle púbic no tant poc desenvolupat com el del Falcarius però no tant extrem com el dels Terizinosaures derivats. Però el fet curiós sobre l'ili del Lingyuanosaurus és que la vora ventral del procés preacetabular es poc ampla, mentre que aquesta és més ampla en el més basal Falcarius i encara molt més en els Terizinosaures derivats. Això significa que l'evolució de les característiques pròpies de l'ili dels Terizinosaures no es va donar de forma lineal si no en forma de mosaic, amb tàxons en una situació més basal (o més derivada) en algunes parts de l'os que altres. Pel que fa a les cames, aquestes segueixen sent més llargues en el Lingyuanosaurus que en els Terizinosaures derivats a causa de la tíbia més llarga que el fèmur, però ja presenta la robustesa pròpia dels representants més moderns del clade gràcies a un fèmur robust amb un trocànter anterior reduït (mentre que en els Terizinosaures més basals que la nova espècie xinesa el fèmur és més gràcil i un trocànter anterior més gran).

Comparació entre els ilis del Falcarius (a), el Beipiaosaurus (b), el Lingyuanosaurus (c) i tres Terizinosaures derivats (Suzhousaurus, Nanshiungosaurus i Segnosaurus; d, e i f). Es nota a primera vista l'estretor del procés preactebular del Lingyuanosaurus en relació amb el Falcarius i els  Terizinosaures derivats.
Foto: Yao et al. (2019)/Scientific Reports.
El Lingyuanosaurus seria un dinosaure amb una mida semblant a la dels dos altres Terizinosaures de la Biota de Jehol (al voltant dels 2 m de llargada), el que en principi és poc probable que passés perquè s'hauria desenvolupat una competència ferotge pels recursos entre els diferents animals. No obstant això, hi ha tres possibilitats per explicar la presència de tres Terzinosaures d'una mida semblant al Liaoning de l'Aptià: que almenys el Lingyuanosaurus no hagués convingut amb les dues altres espècies per la certa diferència temporal entre les Formacions Yixian i Jiufotang (si és que es confirma que el Lingyuanosaurus prové de l'última), que, a causa de que els altres animals s'han trobat cadascun en un jaciment diferent i de que el desenvolupament geològic del Grup de Jehol consisteix en petites conques no relacionades entre si, haguessin viscut en hàbitats diferents separats per barreres geogràfiques en el cas que fossin contemporanis en el temps i que tinguessin hàbits alimentaris diferents ja que les dents del Jianchangosaurus són diferents a les del Lingyuanosaurus i el Beipiaosaurus i que el Beipiaosaurus presenta unes cames menys adaptades a la cursa que els altres dos dinosaures.

Reconstrucció d'un Lingyuanosaurus.
Foto: Cisiopurple.

dissabte, 5 de gener del 2019

Els dinosaures de l'any 2018: més tàxons de Saurisquis descrits al 2018.

Acabem l'edició 2018 d'Els dinosaures de l'any amb la presentació de tres tàxons més de Saurisquis que es van donar a conèixer l'any passat: un Teròpode Ornitomimosaure del Cretaci inferior dels Estats Units, un Sauròpode Titanosauriform del Cretaci inferior de la Xina i un Sauròpode Mamenquisàurid del Juràssic mitjà de la Xina.

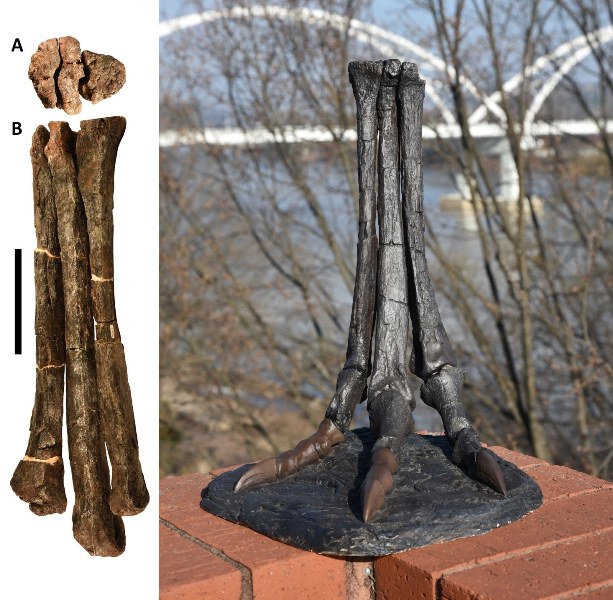
ARKANSAURUS FRIDAYI

Aquest Ornitomimosaure va ser presentat el 19 de març a la revista Journal of Vertebrate Paleontology en un article signat per la Rebecca Hunt-Foster (Oficina d'Administració de Terres del País dels Canyons, Moab, Utah) i en James Quinn (Universitat d'Arkansas, Fayetteville). Es tracta del primer dinosaure descrit a partir de fòssils procedent d'Arkansas (estat nord-americà al qual està dedicat el seu nom genèric) i s'ha convertint en el dinosaure estatal d'Arkansas. L'Arkansaurus està basat en un peu dret gairebé complet que va ser descobert al 1972 en un terreny propietat d'en Joe Friday, veí de la localitat de Locksburg (el qual s'ha volgut homenatjar en el nom específic del dinosaure específic, fridayi), que pertany geològicament a la Formació Trinity (Cretaci inferior Aptià-Albià, 125-100 M.A.). El fòssil van ser descrits per primer cop el 1973 per en Quinn, però aquest va morir al 1977, quedant el fòssil relegat a les col·leccions de la Universitat d'Arkansas fins que la Hunt-Foster els va rescatar de l'oblit el 2002 com a part d'un projecte que formava part dels seus estudis universitaris. Després d'acabar el seu treball inicial al 2003, la Hunt-Foster va tornar a examinar el peu de Locksburg al 2016, nova investigació de la qual va sorgir l'article de descripció de l'Arkansaurus. La Hunt-Foster va afegir en Quinn com autor pòstum per les seves primeres consideracions sobre el fòssil.


Esquerra: metatarsians de l'holotip de l'Arkansaurus en vistes proximal (A) i anterior (B). Dreta: reconstrucció de l'holotip de l'Arkansaurus.
Foto: Hunt-Foster & Quinn (2018)/Journal of Vertebrate Paleontology (esquerra) i Rebecca Hunt-Foster (dreta).
L'Arkansaurus és un dels Ornitomimosaures més antics d'Amèrica del Nord, juntament amb el Nedcolbertia de la Formació Cedar Mountain, contemporània en el temps a la Trinity. Els Ornitomimosaures al Cretaci inferior d'Amèrica del Nord són menys comuns que els seus parents asiàtics de la mateixa època i que els seus descendents del Cretaci superior nord-americà. L'Arkansaurus es pot distingir de la resta d'Ornitomimosaures per presentar falanges unguals diferenciades de les altres, un metatarsià III comprimit lateralment que és oval en vista proximal (vist des de dalt) i una falange ungual distal amb un tubercle flexor (estructura on s'enganxen els músculs flexors de l'os respectiu) fluix. La forma del metatarsià III indica que l'Arkansaurus és més basal que els Ornitomimosaures asiàtics d'una edat similar, però d'una posició filogenètica semblant a la dels altres Ornitomimosaures nord-americans del Cretaci inferior. La presència d'un Ornitomimosaure a l'antiga Apalàtxia destapa una radiació de "dinosaures estruç" a l'est d'Amèrica del Nord molt poc coneguda pel moment i evidencia l'emigració de poblacions d'aquests Teròpodes des de Laramídia, tenint en compte que el mar que separarà Laramídia i Apalàtxia durant el Cretaci superior estava restringit al nord del continent nord-americà i, per tant, no hi havia barreres geogràfiques importants que impedissin el pas dels animals d'oest a est i viceversa.

Reconstrucció d'un Arkansaurus caçant una llagosta en un bosc del Cretaci inferior d'Arkansas.
Foto: Brian Engh.

LIAONINGOTITAN SINENSIS

El Liaoningotitan sinensis va ser presentat el mes de juny a la revista xinesa Global Geology en un article en xinès signat per un equip de paleontòlegs xinesos i japonesos encapçalat per en Chang-fu Zhou (Museu Paleontològic de Liaoning, Shenyang). L'holotip d'aquest Sauròpode es va trobar el 2006 en un jaciment de la Formació Jianshangou datat de principis de l'Aptià (125 M.A.), formant part la Formació Jianshangou de la prolífica Biota de Jehol, els sediments de la qual no solen donar moltes restes d'animals grans degut a la restricció de diàmetre i de gruix de les capes de roca on queden comprimits gairebé la totalitat dels fòssils que s'hi han recuperat. L'holotip del Liaoningotitan, no obstant, presenta moltes de les característiques de preservació dels fòssils de la Biota de Jehol, ja que es tracta d'un esquelet gairebé complet (crani, mandíbula inferior, vèrtebres cervicals, vèrtebres dorsals, vèrtebres caudals, escàpula, húmer, cúbit, radi, ili, isqui, pubis, fèmur i tíbia), la qualitat dels ossos és molt bona i aquests estan fortament aplanat (el que ha impedit una interpretació correcta dels trets ossis i la determinació de la forma de certes restes). El nom genèric significa "tità de Liaoning", mentre que el nom específic sinesis fa referència a la Xina.

Foto i dibuix del crani de l'holotip del Liaoningotitan. Es pot notar l'estat de compressió d'aquest fòssil.
Foto: Zhou et al. (2018)/Global Geology.

Ossos postcranials de l'holotip del Liaoningotitan. Per ordre alfabètic: vèrtebres dorsals, vèrtebres cervicals, ili, tíbia, radi, cúbit, fèmur, húmer, pubis i isqui.
Foto: Zhou et al. (2018)/Global Geology.
La longitud total de l'holotip del Liaoningotitan està estimada en 12-15 m, el que es converteix en el dinosaure més gran identificat a Liaoning. Els caràcters de diagnòstic del Liaoningotitan consisteixen en un marge ventral del maxil·lar convex, una filera dental superior curta i posicionada anteriorment, dents superiors amb una corona en forma d'espàtula i una secció de tall en forma de D, dents inferiors amb una secció de tall el·líptica de la corona, un húmer amb una expansió proximal que representa un 54,9 % de la llargada de l'os i un ili amb un procés preacetabular punxegut. L'anàlisi filogenètica del Liaonigotitan el va recuperar com un Titanosauriform més basal que els Titanosaures però més derivat que el Brachiosaurus i l'Euhelopus, pel que més o menys és un Somphospondylii basal. El Liaoningotitan és el segon Sauròpode de Liaoning, sent l'altre el contemporani en el temps Dongbeititan.

Reconstrucció d'un Liaoningotitan en comparació amb un humà.
Foto: Cisiopurple.
  
ANHUILONG DIBOENSIS

L'Anhuilong diboensis és també el segon Sauròpode del seu tipus recuperat a la seva respectiva província xinesa, sent en aquest cas és un Mamenquisàurid del Juràssic mitjà d'Anhui. Va ser presentat en un article signat per un equip de paleontòlegs xinesos dirigits per en Xin-Xin Ren (Institut de Paleontologia de Vertebrats i Paleoantropologia, Beijing) que va ser publicat a la revista Historical Biology el 19 de setembre. L'holotip del dinosaure consisteix en un húmer, radi i cúbit esquerres complets d'un mateix individu procedents d'un jaciment de la Formació Hongqin (Juràssic mitjà) proper a la localitat de Wangcun (Anhui). El nom genèric significa "drac d'Anhui" en xinès, mentre que el nom específic diboensis fa referència al suposat lloc d'origen de l'holotip (malgrat que no s'indica cap jaciment concret de procedència dels fòssils, ni amb un nom semblant al de la denominació específica del dinosaure ni amb cap altre).

Reconstrucció d'un Anhuilong en comparació amb un humà.
Foto: Cisiopurple.
L'holotip de l'Anhuilong mesuraria originalment 2 m, el que ha fet suposar a en Ren i els seus col·laboradors que, tenint en compte els colls extremadament llargs dels Mamenquisàurids, l'animal  sencer hauria fet 20 m de longitud i hauria pogut elevar el cap fins a 10 m d'alçada. La seva massa corporal no seria superior a les 12 t. Les característiques de diagnòstic de l'Anhuilong són un radi i un cúbit que, respectivament, només suposen la meitat i el 56% de la longitud de l'húmer (els quals són els valors més baixos coneguts per a un Mamenquisàurid), una vora lateral de la cresta deltopectoral de l'húmer dirigida cap al costat i cap endarrere, un còndil (o projecció) lateral del cantó frontal de la vora inferior més robust que el seu equivalent medial i una secció de tall del cúbit amb una forma el·líptica. A l'anàlisi filogenètica, l'Anhuilong és recuperat com el tàxon germà del Huangshanlong i el clade format per aquests dos s'ajunta amb l'Omeisaurus (Juràssic mitjà de Sichuan) per donar lloc al clade germà de tota la resta de Mamenquisàurids. Encara que hi ha la sospita de que l'Anhuilong sigui un sinònim menor del Huangshanlong, un húmer molt més robust i un avantbraç molt més llarg de l'últim dinosaure descarten per ara la relació de sinonímia taxonòmica. La presència de dos Mamenquisàurids de la mateixa època a Anhui indica que aquests dinosaures ja eren un grup divers a la Xina pel Juràssic mitjà.

dissabte, 6 d’octubre del 2018

Bayannurosaurus perfectus, nou Iguanodont del Cretaci inferior de la Xina.

Al 12 d'abril es va publicar a la revista Science Bulletin un article signat pel paleontòleg de l'Institut de Paleontologia de Vertebrats i Paleoantropologia de l'Acadèmia Xinesa de Ciències Xing Xu i cinc investigadors xinesos més que consisteix en la creació d'un nou tàxon d'Ornitòpòde Iguanodont basat en fòssils procedents del jaciment de Chulumiao (integrat a la Formació Bayingobi, Cretaci inferior Aptià) dins de la comarca de Bayannur de la Regió Autònoma de Mongòlia Interior, al nord de la Xina (sent justament de Bayannur d'on prové el nom genèric Bayannurosaurus). L'holotip d'aquest nou tàxon de dinosaure és un esquelet de 9 m de longitud gairebé complet i amb molts dels seus elements en connexió anatòmica, un estat de preservació no molt comú que li ha fet valer el nom específic de perfectus ("perfecte" en llatí). La gran mida, la fusió dels ossos de la caixa craniana i el tancament de la sutura entre els centres vertebrals i les apòfisis espinoses indiquen que l'holotip del Bayannurosaurus perfectus era un adult.

Dibuix de l'esquelet holotípic del Bayannurosaurus, amb ossos pintats de varis colors depenent de la part del cos.
Foto: Xu et al. (2018)/Science Bulletin.
El Bayannurosaurus presenta tres caràcters ossis que no s'observen en cap altre Iguanodont: un jugal amb un procés postorbital (zona d'articulació amb el postorbital) relativament robust i corbat anteriorment i amb un procés posterodorsal (allargament situat a la part de darrere de l'os) en forma de corretja, una falange ungual del dit manual I llarg i de forma subcònica i un procés preacetabular de l'ili amb un marge dorsal fortament convex. A més, el Bayannurosaurus mostra a la vegada característiques basals i d'altres de derivades en el clade d'Iguanodonts Ankylopollexia al qual pertany. Entre els caràcters més primitius es poden destacar una fossa antorbital circular i petita, una dent de reemplaçament per a cada alvèol dental a la bateria dental del dentari i una cresta deltopectoral de l'húmer dirigida cap endavant. Per la seva banda, entre els caràcters més evolucionats trobem una part davantera del maxil·lar bifurcada, una apòfisi espinosa de la vèrtebra axis alta d'amunt cap avall i ampla d'esquerra a dreta i una falange ungual del dit manual III aplanada i en forma de peülla. Aquesta posició intermèdia del Bayannurosaurus en termes osteològics es troba confirmada pels resultats de la seva anàlisi filogenètica, en la qual no es troba dins dels Ankylopollexia més basals però fora del clade més exclusiu i derivat Hadrosauriformes, tenint com a tàxon que l'acompanya pel cap baix l'Hypselospinus (Cretaci inferior Valanginià d'Anglaterra) i com a acompanyant pel cap alt l'Ouranosaurus (Cretaci inferior Aptià-Albià de Níger), sent aquest últim el tàxon germà d'Hadrosauriformes.

Anàlisi filogenètica dels Iguanodonts amb la inclusió del Bayannurosaurus. També s'indiquen l'origen geogràfic i l'època de cada tàxon i un mapa amb la disposició dels continents durant el trànsit Juràssic superior-Cretaci inferior on s'indiquen els moviments de dispersió dels Iguanodonts, dels quals es parlarà al paràgraf de baix.
Foto: Xu et al. (2018)/Science Bulletin.
Després d'establir les característiques de diagnòstic i la situació filogenètica del Bayannurosaurus, Xu i col·laboradors han investigat respecte al mode de locomoció del nou dinosaure i a l'evolució de la distribució geogràfica dels Iguanodonts durant el Juràssic superior i el Cretaci inferior. Per establir si el Bayannurosaurus era bípede o quadrúpede, s'ha comparat la longitud del seu fèmur amb la de la seva tíbia i aquesta relació s'ha confrontat més tard amb la coneguda d'altres espècies d'Iguanodonts i Ornitòpodes no-Iguanodonts, fent amb el mateix amb la mesura del quart trocànter del fèmur. El Bayannurosaurus té el fèmur més gran que la tíbia i un quart trocànter reduït, trets que també es troben en els Hadrosàurids (els Iguanodonts més derivats) i que denoten que el nostre protagonista seria quadrúpede durant bona part del temps però que podria adoptar ocasionalment la postura bípeda, mode locomotor conegut com bipedisme faculatiu. Per una altra banda, i utilitzant una Anàlisi Estadística de Dispersió i Vicariància (SDVA, per lesa seves sigles en anglès), Xu i col·laboradors van obtenir que els Iguanodonts s'haurien originat a l'Amèrica del Nord a principis del Juràssic superior degut a que els membres del clade més antics (Camptosaurus i Uteodon) s'han trobat en jaciments de la Formació Morrison (mitjans-finals del Juràssic superior). Entre aquestes dades i el Valanginià (140-133 M.A.), els Ankylopollexia basals haurien emigrat de l'Amèrica del Nord a Europa i d'aquí cap a l'Àsia degut a que durant el Valanginià ja trobem aquests dinosaures a Euràsia. Aquesta dispersió cap a l'est dels Iguanodonts hauria estat afavorida per un període de regressió marina (per tant, de baixada del nivell del mar) que es va produir en el trànsit entre el Juràssic superior i el Cretaci inferior. A més, els resultats de la SDVA mostren que hi va haver com a mínim dues migracions d'Iguanodonts europeus cap a l'Àsia durant el Cretaci inferior. A la vegada, al Cretaci inferior també trobem Iguanodonts a Àfrica, i tot sembla indicar que aquests dinosaures s'haurien dirigit cap al sud tenint Europa com a punt de partida (l'altra possibilitat, l'emigració des de l'Amèrica del Nord cap a la del Sud i des d'aquí cap a Àfrica, no és plausible en aquests moments degut a la gairebé absència de fòssils d'Iguanodonts del Juràssic superior i del Cretaci inferior a l'Amèrica del Sud).

Diagrama resultant de l'anàlisi de les mesures de les extremitats per determinar el mode locomotor dels Ornitòpodes. El Bayannurosaurus es troba a la part central del diagrama, una mica desviat cap a l'esquerra, a prop de l'Hadrosàurid Saurolophus.
Foto: Xu et al. (2018)/Science Bulletin.

Reconstrucció de dos Bayannurosaurus de diferent mida (probablement un adult i un juvenil) pasturant. A l'esquerra de la foto es veuen les restes cranials de l'holotip del Bayannurosaurus. Captura de la portada del número de la revista Science Bulletin en que surt la seva descripció.
Foto: Science Bulletin.